馬拉松訓練:身體如何適應第 1 章
Endurance and Adaptation
本章目錄
本章給你馬拉松背後的生理學:身體如何為數小時的跑步支付、什麼限制了它能使用的氧氣量、為什麼它能維持的配速低於那個上限、每公里要花多少成本;以及將生理學轉化為一個賽季的兩個概念:為什麼體能在課表之間建立而非課表之中,為什麼計畫在數月間上升然後緩和。它教導、、、、和是什麼;它不告訴你如何訓練、吃什麼、喝什麼,也不告訴你該對自己的身體做什麼。
三大能量系統同時為每一步支付
每一次肌肉收縮(muscle contraction)都由三磷酸腺苷(ATP (三磷酸腺苷))支付,而肌肉只儲存幾秒的量;三大能量系統(energy system)持續重新合成它:磷酸原系統(phosphagen system)、糖酵解(glycolysis),以及粒線體氧化(mitochondrial oxidation)醣類(carbohydrate)和脂肪(fat)。
問強度和時間:三個系統從第一步就同時運作;強度和時間決定混合比例。磷酸原系統最快,約十秒耗盡;糖酵解在十五秒內達到高峰,產生乳酸(lactate),支撐半分鐘至兩分鐘的努力;氧化每秒最慢,但可以維持數小時。
根據一個估算,一次最大 10 秒全力衝刺(all-out effort)大約一半能量來自磷酸原系統,幾乎沒有來自氧化;一次 30 秒衝刺大約四分之一來自氧化;一場維持數小時的馬拉松則幾乎完全依靠氧化。
「身體像換擋一樣切換系統:一次一個。」三個系統從起步就同時貢獻;只有各自的比例在變。 「馬拉松是慢速比賽,所以只燒脂肪,不需要醣類。」較慢的跑步燃燒更多脂肪,但在馬拉松強度下,醣類仍然提供大量能量,而且是唯一可能耗盡的燃料。 「『無氧』即肌肉缺氧了。」糖酵解在高速運行時都會產生乳酸,無論氧氣供應如何。
最大攝氧量是上限,不是比賽
最大攝氧量(VO₂max (最大攝氧量))是身體攝取和利用氧氣的最高速率,即氧化系統的上限(ceiling)。它等於最大心輸出量(cardiac output)乘以從每升血中提取的氧氣量。
在漸增負荷測試(graded test)中,攝氧量隨速度上升,直到速度仍在增加但它進入平台期(plateau);平台就是上限。要找出什麼限制了它,追蹤氧氣從空氣到肌肉的路徑。在健康的受訓者中,限制在輸送端:改變攜帶或泵送的氧氣量,上限就隨之移動;訓練主要通過更大的每搏輸出量(stroke volume)和心輸出量來提高它。
在 HERITAGE Family Study 中,481 名久坐的成年人(sedentary adult)跟隨同一個 20 週計畫:VO₂max (最大攝氧量) 平均上升約 400 mL/min,但有些人幾乎沒有提升,有些人超過 1 L/min,而且反應在家族中聚集。
「受肺部限制:你吸不夠空氣。」呼吸可以增加超過十倍;上限主要由心臟輸送多少氧氣決定。 「VO₂max (最大攝氧量) 最高的贏。」它是上限,不是比賽:能維持上限的多少比例、每公里消耗多少氧氣,決定了在上限之下誰更快。 「同樣訓練,同樣提升。」同一計畫下的提升範圍從接近零到超過 40 %。
乳酸閾值是可持續配速
乳酸閾值(lactate threshold)是血乳酸(blood lactate)首次高於靜態水平的強度;更高處是最大乳酸穩定狀態(maximal lactate steady state),即乳酸產生和清除仍然平衡的最快配速。
在漸增負荷測試中繪製血乳酸對速度的曲線:平坦、第一次上升、然後不停攀升。最高的穩定狀態大致標誌著可持續配速(sustainable pace):以小時計,不是以分鐘計。訓練將它移到 的更高比例,即使上限不變:久坐者約 60 %,頂尖耐力運動員 75 至 85 %。
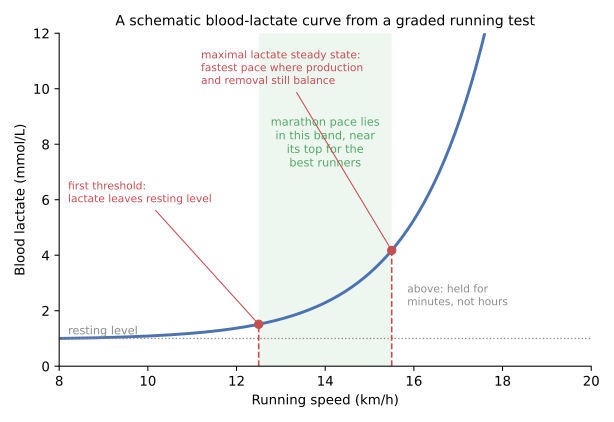
十六名世界級男性跑者接受 Breaking2 測試:平均 VO₂max (最大攝氧量) 71 mL/kg/min,乳酸首次上升在 18.9 km/h(佔其 83 %),乳酸轉折點在 20.2 km/h(92 %);兩小時馬拉松配速 21.1 km/h 略高於兩者。
「乳酸是廢物:它導致灼燒感和第二天的痠痛。」乳酸是燃料,被肌肉和心臟燃燒;它的上升標誌糖酵解速度超過清除,而第二天的痠痛是纖維損傷,主要在下坡跑後出現。 「越過閾值後肌肉就缺氧了。」糖酵解在高速運行時都會產生乳酸,無論氧氣供應如何。 「它是固定數字:每升 4 mmol。」那只是定位它的眾多慣例之一;生理學是平衡,不是數字。
跑步經濟性是每公里的攝氧成本
跑步經濟性(running economy)是在給定次最大速度(submaximal speed)下的穩態攝氧量:每公里的攝氧成本(oxygen cost);經濟性更好的跑者在相同速度下消耗更少的氧氣。
讓跑者在低於的固定速度下維持數分鐘,測量攝氧量,以每公斤每分鐘或每公里表示;只在相同速度下比較跑者。在 VO₂max (最大攝氧量) 相近的受訓跑者中,經濟性可以相差多達 30 %,在上限相同時預測表現。任何改變氧氣賬單的因素都算:纖維和粒線體、呼吸和心臟工作、跑步力學(stride mechanics)和肌腱彈性(tendon elasticity)、肌肉徵召(muscle recruitment)。
Paula Radcliffe 的經濟性在 1992 至 2003 年間改善了約 15 %,而她的 VO₂max (最大攝氧量) 基本穩定;正是在這段時期,她創下了女子馬拉松世界紀錄 2:15:25。
「VO₂max (最大攝氧量) 相同,速度就相同。」上限相同,經濟性相差近三分之一;更經濟的跑者在上限的每個比例下都更快。 「經濟性只是跑姿:修正步態就行。」跑者在沒有提示的情況下會自然採用最經濟的步態,而測量到的跑姿與經濟性之間的關聯小到中等;肌肉、肌腱和呼吸的成本也算在內。 「一旦 VO₂max (最大攝氧量) 停止上升,你就到頂了。」經濟性在上限停止移動後,仍隨跑步年資繼續改善。
Breaking2 的實驗室數據展示了經濟性、上限和閾值如何組合成配速。以下是基於已發表平均值的假設運算:
- 取測量的攝氧成本。 七名在戶外以 21.1 km/h 達到穩態的運動員,平均每公斤每公里使用 191 mL 氧氣。
- 將速度換算為每分鐘公里數。 km/min。
- 將成本乘以速度得到攝氧需求。 mL/kg/min 就是那個配速的成本。
- 將需求與上限和閾值比較。 對比平均 VO₂max (最大攝氧量) 71 mL/kg/min,:兩小時配速要求約 95 % 的上限,高於該組 92 % 的乳酸轉折點。這與十六人中只有七人能在該配速達到穩態一致,也說明了為什麼這個配速需要同時具備異常高的上限、異常高的可持續比例和異常好的經濟性。
常見的錯誤在第 1 步:在不同速度下比較兩名跑者的經濟性。每公里的成本隨速度而變,所以比較只在相同速度下才有意義。
超負荷、恢復與超補償:體能在課表之間建立
超負荷(overload)是一堂對身體要求比平時更多的課表;超補償(supercompensation)是在隨後的恢復(recovery)中重建到略高於原來的水平。適應在課表之間建立,不是在課表之中。
一堂課表之後,問什麼被擾亂了、什麼正在被重建:燃料、纖維、粒線體、微血管、每搏輸出量。然後對模式問三件事:每次超負荷是否比上一次多一點(漸進性(progression));它是否刺激比賽所需要的(特異性原則(specificity));刺激是否持續(可逆性(reversibility))。落在未完成恢復上的課表堆疊疲勞(fatigue);落在已重建水平上的堆疊體能。
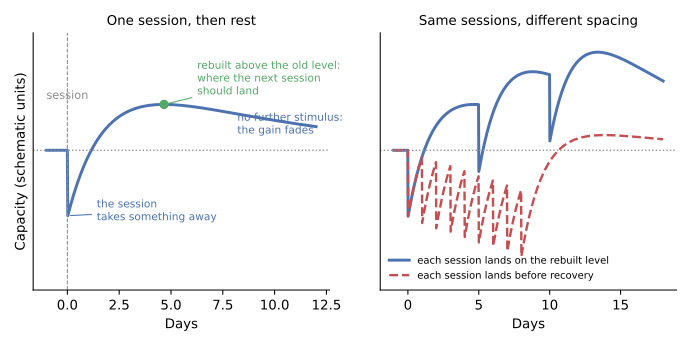
六個月的耐力訓練通常使久坐成年人的 VO₂max (最大攝氧量) 提升 15 至 20 %;在 60 至 71 歲訓練了 9 至 12 個月的男女中,提升範圍從 0 到 43 %。每一次都是一個恢復一個恢復地建立的。
「你在訓練中變強。」一堂高強度課表之後,身體是耗盡的、更慢的;重建到超過原來的水平是在之後的幾天裡發生的。 「更多總是更好;休息日是浪費的日子。」恢復是適應發生的地方;傷患(injury)集中在負荷快速上升的地方。 「體能一旦建立就會保持。」VO₂max (最大攝氧量) 和血漿容量在停止訓練兩週內下降;收益在兩至八個月內大致消失。
Hickson 實驗室的維持實驗(在公共衛生局長報告的綜述中報導)顯示了一堂課表的哪個部分能保住所建立的成果。原本每週訓練六次而提升了 VO₂max (最大攝氧量) 的人,在減少到每週兩至四次後保住了提升;每次課表的持續時間削減多達三分之二時,提升也大致保住,但前提是縮短後的課表維持強度;而當強度削減僅三分之一,接下來的 15 週內 VO₂max (最大攝氧量) 就顯著下降。頻率和持續時間可以減少;強度才是適應所回應的。
週期化訓練與減量期安排負荷,使巔峰落在比賽日
週期化訓練(periodization)是將訓練負荷在數月間安排成階段:通常是一個訓練量遞增的一般準備期、一個更多接近比賽配速跑步的專項準備期,然後是減量期(taper);使超負荷和恢復加總為比賽日的巔峰狀態。
把任何計畫讀成在數月間的延展:訓練量先上升,然後重心轉向比賽配速。減量期是最後一步:在 2 至 3 週內訓練量下降約 40 至 60 %,同時保持強度和頻率,使疲勞消退得比體能快;在訓練有素的耐力運動員中價值約 1 至 3 %。
一篇綜述中的世界級馬拉松跑者圍繞春季和秋季馬拉松進行週期化訓練,每次賽後輕鬆 7 至 14 天,將賽前 5 至 6 個月分為一般準備期和專項準備期,只在最後 7 至 10 天大幅削減訓練量。
「減量意味著失去體能:補回錯過的長課。」可逆性需要數週;幾天的減量在強度課表保住體能的同時消除疲勞。 「減量期就是休息。」強度削減三分之一就會在數週內損失 VO₂max (最大攝氧量);減量期削減訓練量但保持強度。 「存在一個被證明的計畫。」比較週期化結構的研究大多發現收益相當;沒有直接證據為各模型排序。
一場比賽,六個概念綜合運用
最後一個假設:Yara 的馬拉松,用本章來讀。在她三個半小時的比賽中,肌肉幾乎完全由氧化支付,即;肝醣是唯一可能在後段耗盡的燃料。她最多能使用多少氧氣是她的,主要由心臟的輸出量設定;它為她設限,但不決定她的時間。她維持的配速靠近她的:乳酸產生和清除仍然平衡的最快速度;而那個配速下每公里花她多少成本,是她的。兩個上限相同的跑者,僅憑這兩項就可以相差許多分鐘。
這些沒有一樣是在比賽日建立的。她帶來的每一項能力都是在數月間課表之間的恢復中建立的,每一堂課表都是一次,先讓她下降再讓她上升;而安排那些課表的賽季(訓練量先、比賽配速後,以及一個讓疲勞消退而體能保留的減量期)就是。六個概念,一場比賽;她的賽季如何被塑造是教練的問題,為什麼那樣塑造是本章的問題。
資料來源
- 1 U.S. Department of Health and Human Services, Physical Activity and Health: A Report of the Surgeon General (Atlanta: CDC, 1996), Chapter 3 'Physiologic Responses and Long-Term Adaptations to Exercise', pp. 61–77 — public domain (U.S. Government work); read in the ERIC full-text copy — 來源
- 2 U.S. Department of Health and Human Services, Physical Activity Guidelines for Americans, 2nd edition (Washington, DC: HHS, 2018), Chapter 2 box 'It Is About Overload, Progression, and Specificity', Chapter 7 'Increase Physical Activity Gradually Over Time', and the Glossary — public domain (U.S. Government work) — 來源
- 3 Kyle R. Barnes & Andrew E. Kilding, 'Running economy: measurement, norms, and determining factors', Sports Medicine – Open 1:8 (2015), doi:10.1186/s40798-015-0007-y — CC BY 4.0 — 來源
- 4 Thomas Haugen, Øyvind Sandbakk, Stephen Seiler & Espen Tønnessen, 'The Training Characteristics of World-Class Distance Runners: An Integration of Scientific Literature and Results-Proven Practice', Sports Medicine – Open 8:46 (2022), doi:10.1186/s40798-022-00438-7 — CC BY 4.0 — 來源
- 5 Julien S. Baker, Marie Clare McCormick & Robert A. Robergs, 'Interaction among Skeletal Muscle Metabolic Energy Systems during Intense Exercise', Journal of Nutrition and Metabolism 2010:905612, doi:10.1155/2010/905612 — CC BY — 來源
- 6 Benjamin I. Rapoport, 'Metabolic Factors Limiting Performance in Marathon Runners', PLoS Computational Biology 6(10):e1000960 (2010), doi:10.1371/journal.pcbi.1000960 — CC BY 4.0 — 來源
- 7 Regula Furrer, John A. Hawley & Christoph Handschin, 'The molecular athlete: exercise physiology from mechanisms to medals', Physiological Reviews 103(3):1693–1787 (2023), doi:10.1152/physrev.00017.2022 — CC BY 4.0; §2.1 (principles of training), §3.1 (oxygen transport and VO₂max, Table 1) and §3.6 (how adaptation is brought about) — 來源
- 8 Hermann Heck & Henning Wackerhage, 'The origin of the maximal lactate steady state (MLSS)', BMC Sports Science, Medicine and Rehabilitation 16:36 (2024), doi:10.1186/s13102-024-00827-3 — CC BY 4.0 — 來源
- 9 Gustavo Z. Schaun, 'The Maximal Oxygen Uptake Verification Phase: a Light at the End of the Tunnel?', Sports Medicine – Open 3:44 (2017), doi:10.1186/s40798-017-0112-1 — CC BY 4.0 — 來源
- 10 John Kiely, 'Periodization Theory: Confronting an Inconvenient Truth', Sports Medicine 48:753–764 (2018), doi:10.1007/s40279-017-0823-y — CC BY 4.0 — 來源
- 11 Jules A. A. C. Heuberger et al., 'Repeatability and predictive value of lactate threshold concepts in endurance sports', PLoS ONE 13(11):e0206846 (2018), doi:10.1371/journal.pone.0206846 — CC BY — 來源
- 12 David R. Bassett Jr & Edward T. Howley, 'Limiting factors for maximum oxygen uptake and determinants of endurance performance', Medicine & Science in Sports & Exercise 32(1):70–84 (2000), doi:10.1097/00005768-200001000-00012 (consulted — the abstract's three lines of evidence for the delivery limitation, and 'speed at LT is the best physiological predictor') — 來源
- 13 Claude Bouchard et al., 'Familial aggregation of VO2max response to exercise training: results from the HERITAGE Family Study', Journal of Applied Physiology 87(3):1003–1008 (1999), doi:10.1152/jappl.1999.87.3.1003 (consulted — the numbers in the abstract) — 來源
- 14 Andrew M. Jones, 'The Physiology of the World Record Holder for the Women's Marathon', International Journal of Sports Science & Coaching 1(2):101–116 (2006), doi:10.1260/174795406777641258 (consulted — the abstract: 15 % improvement in running economy between 1992 and 2003; 2:15:25) — 來源
- 15 Andrew M. Jones et al., 'Physiological demands of running at 2-hour marathon race pace', Journal of Applied Physiology 130(2):369–379 (2021), doi:10.1152/japplphysiol.00647.2020 (consulted — the abstract's numbers for the sixteen Breaking2 athletes) — 來源
- 16 Shona L. Halson, 'Monitoring Training Load to Understand Fatigue in Athletes', Sports Medicine 44 Suppl 2:139–147 (2014), doi:10.1007/s40279-014-0253-z (consulted — external versus internal load) — 來源
- 17 David C. Poole, Harry B. Rossiter, George A. Brooks & L. Bruce Gladden, 'The anaerobic threshold: 50+ years of controversy', Journal of Physiology 599(3):737–767 (2021), doi:10.1113/JP279963 (consulted — named for the naming controversy; not adapted) — 來源
- 18 OpenStax Anatomy and Physiology 2e §10.3: Muscle Fiber Contraction and Relaxation (consulted only — CC BY-NC-SA 4.0 at the source on 2026-08-19, not adapted; the ATP-source durations) — 來源
- 19 Wikipedia, 'Breaking2' (consulted for the date and finishing time of the Monza run) — 來源